domingo, 17 de enero de 2010

¿Cuánto le debemos a los virus? (bis)


Con cierto efecto retardado, otra cuestión que nos deja el modelo de Bell y los de la eucariogénesis vírica en general: todos ellos implican la existencia de virus (vaya lince que soy).


Y los virus qué, ¿cómo aparecieron ellos?

martes, 12 de enero de 2010

¿Cuánto le debemos a los virus?


El criterio último de toda clasificación es el de la similitud, unimos los elementos de un cojunto en función a uno o varios rasgos compartidos, se parecen en algo. En la naturaleza, generalmente, los seres vivos que se parecen suelen estar relacionados, emparentados. Esta similitud puede ser algo tan obvio como que los tetrápodos tienen cuatro extremidades, todas las aves tienen alas aunque algunas no vuelen; otros criterios menos obvios como que todas las plantas terrestres tienen un tipo determinado de clorofila (además de otros que pueden tener), o un criterio tan críptico (no lo vemos) como que su secuencia de ADN es muy parecida. Con seres vivos macroscópicos o con caracteres visibles no es excesivamente complicado clasificarlos, hay plantas con flores y plantas sin flores, les ponemos nombre a esos grupos y solemos decir que las plantas con flores tienen un ancestro común a partir del cual evolucionaron y las plantas sin flores otro ancestro común a partir del cual evolucionaron, por ejemplo. Pero cuando pasamos a cosas muy triviales ya no está tan clara la cosa. Por ejemplo, ¿por qué todos los tetrápodos tiene, en sus extremidades, 5 dedos? ¿y por qué todos ellos -o casi- tienen hacia el interior, hacia el cuerpo, un “dedo gordo” y hacia el exterior un “dedo chico”?. Sin duda el ancestro que generó a todos los tetrápodos debió tener 5 dedos y en esa disposición concreta (esto no quita que ese ancestro coexistiera con otros con, yo que sé, 5 patas con 2 dedos cada una y cosas así, pero el que sobrevivió para dar lugar a nuestro grupo fue así).

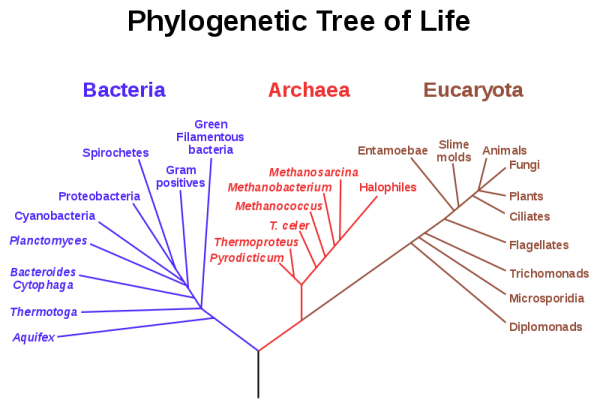
Cuando esta comparación se hace entre los distintos dominios (archaea, bacteria y eukarya) vemos una serie de características que nos dividen los tres grupos. Análisis moleculares indican que la organización celular procariota es más antigua que la eucariota, esa célula primitiva era procariota o algo parecido y luego, con el paso del tiempo, algo ocurrió que separó a un linaje que daría lugar a los eucariotas y a otro linaje que daría lugar a las arqueas (Woese et al. 1990). Y las arqueas, dentro de lo que cabe, no son muy distintas de las bacterias (que no me pegue nadie, es una simplificación) por lo que el cambio fundamental ocurrió en el otro linaje, el que daría lugar a la célula eucariota. Así, eucariotas y arqueas tendrían un ancestro común, distinto a las bacterias. Si enumeramos algunas de esas nuevas características tenemos la adición de la caperuza a ARN mensajero, que el material genético no es circular sino lineal, la membrana nuclear, la existencia de los telómeros, etc. Si nos fijamos en los seres vivos, nada se parece a los eucariotas. Pero si consideramos ser vivo a los virus... la cosa cambia, ¿no?. Si metemos en la comparación a los virus, vemos una serie de curiosas coincidencias, como que sus genomas son lineales, sus mensajeros tienen caperuza, telómero, transporte de los ácidos nucléicos (del virión a la célula en virus, del núcleo al citoplasma en eucariotas), compartimentación del genoma, etc. Características que, hasta la fecha, no explican otras hipótesis, las cuales proponen la simbiosis, previa fagocitosis, entre una arquea y una bacteria y de una simbiosis metabólica entre bacteria y arquea -sintrofia- (Gupta and Golding 1996; Margulis 1996; Ribeiro y Golding 1998; Zillig 1991; Gupta 1998; Martin and Muller 1998; Vellai et al. 1998; Moreira y Lopez-Garcia 1998; Lopez-Garcia y Moreira 1999; Lake y Rivera 1994; Sogin 1991; Cavalier-Smith 1987).

Así que con esa similitud entre el núcleo eucariota y algunos virus complejos de ADN, Philip John Livingstone Bell, de la Universidad de Macquarie (Sidney, Australia), lanza una hipótesis distinta: un virus de ADN fue el origen del núcleo eucariota. Según su modelo, un virus de esas características tuvo una presencia persistente dentro de la célula antecesora a eucariotas y arqueas. Dado que el capping (añadir la caperuza al ARN mensajero) sólo se da en virus y eucariotas, sus enzimas sólo se encuentran en esos grupos y su origen cobra especial relevancia en el modelo de Bell. Ese ancestro vírico del núcleo debió ser un virus envuelto de ADN, similar a virus actuales como los poxvirus o el virus de la fiebre porcina africana (ASF, del inglés African Swine Fever Virus), salvo que el hospedador del virus fue una arquea. Y no cualquiera, tal y como se comenta en la discusión de Moreira y López-García, ese antecesor debió ser un tipo de mycoplasma perteneciente a la famila de las euriarqueotas metanogénicas, similar al sintrófico Methanoplasma elizabethii (Rose y Pirt, 1981). Como son virus con envuelta, se fusionarían las membranas y la partícula vírica, con su material genético y el equipo enzimático necesario, quedaría en su interior (Moss 1996). La arquea mencionada crece en filamentos ramificados, permitiendo un contacto íntimo con especies bacterianas productoras de hidrógeno y dióxido de carbono. La ausencia de pared celular permite, potencialmente, la infección por virus que utilizan la fusión de membranas como mecanismo de entrada (las bacterias tienen, en general, una pared bacteriana además de la membrana celular). Así que se propone que se estableció una infección persistente, una presencia persistente del virión en el citoplasma que sería un paso crucial en la eucariogénesis. Se ha observado que infecciones persistentes de poxvirus, como las observadas en las células de la eritroleucemia de Friend (Pogo y Friend, 1982), permiten el mantenimiento del virus en la célula durante varias generaciones de la célula sin integrarse en el genoma del hospedador. Genes del hospedador, como aquellos relacionados con el metabolismo de los nucleótidos y la traducción, pudieron incorporarse al genoma vírico de modo similar al que se incorporan resistencias a fármacos u otro tipo de genes que otorgan funciones varias. El virus “usurparía” esas funciones a la célula hospedadora.

Cuando las membranas se fusionan, las proteinas de membrana también se fusionan y quedan ahí en la membrana. El virus tiene proteínas de fusión que posibilitaron la entrada del virus, proteínas que ahora están en la membrana celular y esto posibilitaría un proceso de fagocitosis un tanto primitivo con el que conseguir nutrientes de otros sintrofos antes que los obtenidos mediante la síntesis por el propio hospedador. La pérdida del genoma de la arquea se daría después de que el virus se apropiase de la capacidad de traducción, pero antes de que el virus se apropiase de otros genes como los relacionados con el metabolismo, generando un eucariota primitivo que dependía enteramente de la fagocitosis para obtener nutrientes y energía. En éste caso, el núcleo eucariota poseería genes para el procesado de la información que son de origen arqueal, pero tendría pocos genes para el metabolismo en general. Doolittle, en 1998, propuso que se pueden captar genes de bacterias y otros sintrofos. Si esos genes, por ejemplo, permitieran la síntesis de lípidos unidos por enlaces tipo ester en lugar del tipo éter de las arqueas... pasaría a tener, en el tiempo, una membrana lipídica bacteriana que es la misma que hoy día tienen las eucariotas.

Un proceso como el que Bell propone, generaría una célula con gran parte de las características de eucariotas y que no explican los otros modelos. En éste caso, la madre del cordero radica en encontrar un virus que infecte a arqueas y que tenga una organización similar a los poxvirus o a los virus ASF, capaz de “encapuchar” el mensajero e introducirlo en el citoplasma de la arquea.

Aunque todo esto así puesto parece muy lineal, de A vamos a B y de B a C y que todo ocurrió en la misma célula, no hay que perder la perspectiva ecológica, las poblaciones. En una población de arqueas unas pocas tuvieron su infección persistentes, no murieron y se dividieron, con el virus dentro, aumentando su presencia en la población. Posteriormente, en unas pocas células de ese grupo, sufrió otro cambio. Y así hasta que apareció un grupo de células con núcleo. Existen más hipótesis sobre el mecanismo de cómo pudo ocurrir, el expuesto es uno de ellos, pero todas ellas tienen como protagonista a virus y, más concretamente, virus de ADN.

Sin duda los virus dan mucho de sí, no sólo nos ponen enfermos y nos hacen blasfemar, podríamos incluso deberles nuestra existencia. ¿Implica esto que no debemos lavarnos para darles a estos bichos un lugar donde vivir en compensación por nuestra existencia?

lunes, 14 de diciembre de 2009

Evolución vírica (y III)

Del modelo de interferencia clonal se deducen algunas conclusiones importantes para entender la evolución de los virus de ARN. En primer lugar, el reemplazamiento de una variante vírica mayoritaria por otra generada a raíz de una mutación es un suceso esporádico, independientemente del tamaño de la población y de la frecuencia de mutaciones beneficiosas. En segundo lugar, la tasa de adaptación no depende de un aumento en la disponibilidad de mutaciones. Frente a lo postulado por varios autores, no parece que la elevada tasa de mutación que muestran los virus de ARN haya evolucionado como consecuencia del potencial adaptativo que dicha tasa pudiese conferir. Antes bien, una reducción en la tasa de mutación podría beneficiar a las poblaciones víricas, al reducir la tasa con que se acumulan mutaciones deletereas y así frenar el efecto del trinquete de Müller. Ésta tasa de mutación es una consecuencia de una necesidad impuesta por su modo parasitario de vida: mantener un genoma lo más reducido posible, fácil y rápidamente replicable, frente a la opción alternativa de un genoma complejo que determine la maquinaria enzimática necesaria para detectar y oorregir los errores producidos durante la replicación. En tercer lugar, una población vírica residente en un determinado lugar estará protegida contra la invasión por una variante externa más beneficiosa en razón a su ventaja numérica. Si la variante invasora apenas se ha extendido al principio, es probable que aparezca alguna mutación beneficiosa en el genotipo más frecuente, mejorando su eficacia y obstruyendo la labor del invasor hasta su propia eliminación.

Desde el nacimiento oficial de la biología evolutiva en poblaciones víricas allá por 1994, los datos respaldan la idea del enorme potencial adaptativo e ingente variabilidad genética de los virus de ARN. La mutación, fuente última de variabilidad, es la responsable de esa plasticidad. No obstante, las mutaciones también pueden llevar a la extinción de los virus o introducirlos hacia nuevas soluciones adaptativas. Para entender esa evolución adaptativa se van elaborando nuevos modelos teóricos. El tamaño poblacional constituye el factor principal; permite que la selección natural opere sobre las múltiples variantes genéticas que pueden existir en una población vírica en un momento dado.


Bibliografía sobre evolución de virus de ARN:

  • EVOLUTIOINARY DYNAMICS OF FITNESS RECOVERY FROM DEBILITATING EFFECTS OF MÜLLER RATCHET. S. F. Elena, M. Dávila, I. S. Novella, J. J. Holland, E. Domingo y A. Moya en Evolution, vol. 52, págs 309-314, 1998.
  • CLONAL INTERFERENCE AND THE EVOLUTION OF RNA VIRUSES. R. Miralles, y P. J. Gerrish, A. Moya y S. F. Elena en Science, vol. 285, págs. 1745-1747, 1999.
  • MUTATION RATES AMONG RNA VIRUSES. J. W. Drake y J. J. Holland en Proceedings of the National Academy of Sciences of the USA, vol. 96, págs. 13.910-13.913, 1999.