Mostrando entradas con la etiqueta evolución. Mostrar todas las entradas

domingo, 10 de octubre de 2010

El lado oscuro de la evolución: guerra biológica (II)

En 1997 sucedió algo que los científicos hace tiempo que temían, especialmente los médicos. En los casos de tres pacientes geográficamente distantes, una bacteria a menudo letal, Staphylococcus aureus, se vio poco afectada por un antídoto en el que hasta la fecha se podía confiar: la vancomicina, un antibiótico. Afortunadamente, en esos pacientes el microorganismo sí era sensible a otros fármacos y se logró su erradiración. Pero la aparición de S. aureus que no sean susceptibles de un tratamiento óptimo con vancomicina presagia problemas, una pesadilla sanitaria internacional: el aumento de las resistencias bacterianas contra muchos antibióticos que hasta ahora nos ayudaban a controlar las infecciones bacterianas.

Desde los años cuarenta, cuando se empezó a disponer de ellos, se ha venerado su carácter de fármacos milagrosos: proyectiles mágicos capaces de eliminar las bacterias sin dañar en exceso a las células de la persona infectada. Cada nueva década ha traído un aumento de la frecuencia de bacterias que plantan cara no sólo a uno sino a varios antibióticos y cuyo control resulta extremadamente complicado. De hecho, existen cepas de al menos tres especies bacterianas (Enterococcus faecalis, Mycobacterium tuberculosis y Pseudomonas aureginosa), capaces de producir enfermedades potencialmente letales, que escapan ya a la acción de todos los antibióticos del arsenal del que dispone el clínico, un lote de más de cien fármacos.

Pero, ¿cómo se ha llegado a una situación así? Varios procesos interrelacionados son los responsables. Para entenderlos mejor, es necesario comprender los mecanismos por los que los genes capacitan a las bacterias para resistir el ataque de un antibiótico, cuál es la naturaleza de un antibiótico y los daños que éstos ocasionan en los microorganismos.

En sentido estricto, un antibiótico se define como una sustancia natural (esto es, producida originalmente por seres vivos) que inhibe el crecimiento o la proliferación de las bacterias o, directamente, las matan. Cuando la diana son virus se conocen como antivirales y cuando son hongos, antifúngicos (a los científicos nos gusta mucho ponerle nombre a todo, teniendo en cuenta que antibiótico significa etimológicamente antivida -bacteriana o no-). En la práctica, éstas sustancias son mejoradas artificialmente por los humanos con el fin de mejorar su actividad o incluso ampliar el espectro de las especies a las que afectan. Funcionan, de forma general, interfiriendo en procesos vitales. La tetraciclina, por ejemplo, se une a los ribosomas e impide a la bacteria sintetizar nuevas proteínas. La penicilina y la vancomicina impiden la síntesis de la pared celular bacteriana.

Las bacterias disponen de varios mecanismos por los que adquieren genes de resistencia. Muchas heredan los genes de sus predecesores; otras veces son mutaciones genéticas, muy frecuente en bacterias ( 1 ó 2) las que producirán de forma espontánea un gen de resistencia o perfeccionarán uno existente. No en pocas ocasiones reciben los genes de resistencia de otras bacterias vecinas. De hecho, el intercambio de genes está tan difundido en el mundo bacteriano que podríamos considerarlo un gigantesco organismo multicelular, único, en el que las células intercambiasen con facilidad su material genético. Es común que los genes de resistencia se integren en plásmidos, minúsculos anillos de ADN que permiten a las bacterias superar los contratiempos que les depara el medio; aunque los genes también pueden estar integrados en el cromosoma bacteriano, gran molécula de ADN que almacena la información necesaria para la reproducción y el mantenimiento de rutina de la bacteria. A menudo una bacteria transfiere sus características de resistencia a otras mediante la donación de un plásmido. Los virus movilizan, a su vez, genes de resistencia en las ocasiones en las que extraen un gen de una bacteria y lo inyectan en otra. Además, cuando una bacteria muere y se lisa, se rompe, libera su contenido al medio externo y otra bacteria cualquiera puede apropiarse de algún gen liberado (en éstos dos últimos casos, sólo si el gen llega a integrarse en el cromosoma o en el plásmido de la bacteria receptora logrará ejercer su función). Ésta integración es rfecuente, porque los genes de resistencia van frecuentemente junto a transposones, prestos a saltar a otras moléculas de ADN.

El proceso de selección es bastante directo. Cuando un antibiótico ataca a una población bacteriana, destruye a las que son muy sensibles. Pero las células que presentaban la resistencia desde el principio o que la han desarrollado luego (bien por mutación o por transferencia horizontal) pueden sobrevivir, más aún si se administran cantidades insuficientes de antibiótico. La reducción de la competencia por bacterias susceptibles facilita la proliferación de las otras. Cuando un grupo de bacterias se enfrenta a un antibiótico, las más resistentes desplazan sin remisión al resto, patógenos o no. Éste tipo de bacterias, no patógenas pero resistentes, actúan como reservorio de la resistencia a antibióticos, la cual se extiende por transferencia horizontal. Éste efecto de colaboración a favorecido la aparición de cepas multirresistentes de Acinetobacter y de Xanthomonas, productiras de sepsis potencialmente letales en pacientes hospitalizados. Hace 10-15 años de éste tipo de organismos multirresistentes.

Por último, falta la última razón de que se haya llegado a esta situación: su uso. Se ha demostrado que si un miembro de una familia utiliza de forma crónica un antibiótico para combatir el acné, la concentración de bacterias resistentes al tratamiento en la piel aumenta para todos los miembros de la familia. Del mismo modo, un empleo muy elevado de antibiótico en hospitales, guarderías y granjas (donde con frecuencia se administran fármacos a los animales) incrementa los niveles de bacterias resistentes en personas y otros organismos que no reciben el tratamiento; entre ellos debe contarse a quienes vivan en las proximidades de estos epicentros de consumo elevado o siquiera pasen por ellos. Dada la intensificación de los viajes internacionales, no sólo se puede importar/exportar resistencias a antibióticos sino que también se pueden importar/exportar cepas multirresistentes. Por ejemplo, se ha documentado la migración de una cepa multirresistente de Streptococcus pneumoniae desde España hasta Gran Bretaña, Estados Unidos, Sudáfrica y otros países. Esta bacteria, también conocida como pneumococo, produce neumonía, meningitis y otras enfermedades.

La solución a la resistencia bacteriana es modificar químicamente los antibióticos para que sean irreconocibles por sus sistemas de resistencia. Son modificaciones complejas y que cuestan mucho dinero, algo que posteriormente redunda en el precio del producto final y causa malestar de parte de la población. Por ello resulta sorprendende que muchos médicos satisfagan la petición de antibióticos de personas desinformadas en lo que se refiere al tratamiento de catarros y otras infecciones víricas que los antibióticos no pueden curar, muchas veces incluso en contra de su propia opinión médica. Se ha calculado que, en EEUU, alrededor de 50 millones de prescripciones anuales, de un total de 150 millones, son innecesarias. Además, hay pacientes que no terminan el tratamiento y almacenan las dosis sobrantes para automedicarse, o medicar a familiares y amigos, en cantidades menores a las terápicas, lo que supone un caldo de cultivo perfecto a la aparición de resistencias en bacterias que luego podrán producir trastornos de dificil tratamiento.

Algunos ejemplos de bacterias patógenas multirresistentes:

  • Staphylococcus aureus: Causa septicemia, infección de heridas y neumonía; en algunos hospitales más del 60% son resistentes a meticilina; algunas amenazan con presentar a todos los antibióticos (H/C; 1950).
  • Acinetobacter: Causa septicemia en pacientes con afectación del sistema inmune (H; 1990).
  • Enterococcus faecalis: Causa septicemia e infecciones del tracto urinario y de heridas en pacientes inmunocomprometidos; no existe tratamiento para ciertas cepas multirresistentes (H; 1980).
  • Neisseria gonorrhoeae: Causa gonorrea; la presencia de resistencia a varios fármacos limita el tratamiento, esencialmente a cefalosporinas (C; 1970).
  • Haemophilus influenzae: Causa neumonía, otitis y meningitis, sobretodo en niños; se puede prevenir mediante vacunas.
  • Mycobacterium tuberculosis: Causa tuberculosis; no existe tratamiento para ciertas cepas multirresistentes (H/C; 1970)
  • Escherichia coli: Causa infecciones del tracto urinario, septicemia, diarrea e insuficiencia renal aguda; algunas cepas productoras de infecciones urinarias presentan resistencia a varios antibióticos (H/C; 1960).
  • Pseudomonas aureginosa: Causa septicemia y neumonía, sobretodo en pacientes afectados de fibrosis quíscita o con el sistema inmune debilitado; no existe tratamiento para ciertas cepas multirresistentes (H/C; 1960).
  • Shigella dysenteriae: Causa disentería (diarrea hemorrágica); se han descrito epidemias por cepas resistentes y sólo algunas se pueden tratar con fluoroquinolonas, caras y no disponibles, con frecuencia, en países en desarrollo (C; 1960).
  • Streptococcus pneumoniae: Causa septicemia, infección del oído medio, neumonía y meningitis (C; 1970).


El empleo extensivo a escala mundial de antibióticos en medicina, ganadería y agricultura produce la selección de cepas resistentes a éstos fármacos. ¿Cabe deducir que hay que abstenerse de utilizar antibióticos y así detener el avance de éstas bacterias para las que no existiría tratamiento? No, pero casi. Si se quiere que estos fármacos conserven su eficacia contra los patógenos, se deberá hacer un uso más responsable. La sociedad puede aceptar un aumento de la proporción de bacterias resistentes cuando sea necesario tratar una enfermedad, pero este mismo aumento es inaceptable si el recurso de los antibióticos es prescindible. Piensos e insecticidas que carezcan de antibióticos, mejora de las medidas higiénicas en hogares, agricultura y ganadería; se pueden lavar frutas y verduras crudas para eliminar no sólo restos de antibióticos sino de bacterias resistentes (por muy resistentes que sean, si no comen mueren); seguimiento estricto de los tratamientos por parte de los médicos y que éstos administren única y exclusivamente cuando haya necesidad de antibiótico (han verificado que es un agente bacteriano y que realmente se requiere); no conservar restos de antibióticos sino llevarlos a donde indiquen los profesionales para su correcto tratamiento; abstenerse las personas de solicitar antibióticos para cualquier enfermedad que ellos estimen oportuno (sin saber si son bacterianas, viricas, etc.). Siendo algo más estrictos aún, prohibir la inclusión de antibióticos en lociones para manos y otros productos cosméticos y de higiene diaria que incluyen agentes antibacterianos en su composición. Revertir esta tendencia requiere de la colaboración de las instituciones, de los médicos, de los granjeros y de cualquier otro que permita abordar los efectos de los antibióticos desde nuevos puntos de vista. Se precisa de un mejor manejo de los antibiótico y la restitución de la flora bacteriana sensible a esos fármacos para evitar que las bacterias resistentes estén libres de competencia y se puedan perpetuar.

Bibliografía sobre la resistencia a antibióticos:

  • THE ANTIBIOTIC PARADOX: HOW MIRACLE DRUGS ARE DESTROYING THE MIRACLE. S.B. Levy. Plenum Publishers, 1992.
  • DRUG RESISTANCE: THE NEW APOCALYPSE. Número especial de Trends in Microbiology, vol. 2, nº10, pág. 341-425, octubre 1994.
  • ANTIBIOTIC RESISTANCE: ORIGINS, EVOLUTION, SELECTION AND SPREAD. Dirigido por D.J. Chadwick y J. Goode. John Wiley & Sons, 1997.

miércoles, 31 de marzo de 2010

¿Cuándo hablaremos de la Ley de la evolución en lugar de teoría de la evolución?

Cuando hablamos de la evolución con alguien, es casi matemático que se llegue al punto en el que uno de los participantes de la conversación diga: eso no se puede demostrar. Y, fanatismos aparte, suele tener que ver en cosas como 'no puedes demostrar que el bicho X evolucionó a Y', siendo X e Y seres vivos extintos. Además hay otras muchas pajas mentales, pero fundamentalmente se debe a algo así. Bueno, no exactamente: a no poder observar el hecho en sí y a no poder explicar, según ellos, hechos de complejidad singular como la inteligencia. Muchas de esas críticas se pueden encontrar en el libro de Michael Denton, seguidor del diseño inteligente, La caja negra de Darwin. Se ceban con el pobre Darwin, ignorando convenientemente que sus ideas fueron refinadas y ampliadas en lo que hoy día se llama teoría sintética (otra vez el condenado epíteto teoría) aunque podría valernos con esa mera reconstrucción histórica de la que se jacta el propio Denton, se verá más adelante. No obstante, queramos o no en el escenario tenemos que 1) la variedad de las poblaciones se debe a las mutaciones, las cuales se dan al azar, y que se incrementa por la recombinación; 2) esos caracteres fluyen en el seno de una población, hay un flujo genético entre poblaciones cuyos caracteres fluctúan por la deriva génica y, llevado al extremo, puede hacer desaparecer por completo, siendo ese carácter irrecuperable; y 3) la selección natural sería la encargada de filtrar todo lo anterior. Tiene cosas discutibles, como la negación del saltacionismo, pero son flecos comparados con el meollo del asunto, que podría resumirse en lo anterior.

Hoy día somos testigos de muchos hechos curiosos y que no se suelen relacionar. Por ejemplo, no es raro aceptar un análisis de ADN como prueba de paternidad. El hijo o la hija desciende del padre X y la madre Y. Es una prueba tangible y que se puede demostrar, aunque nos tengamos que remontar al experimento de Meselson y Stahl que demostró cómo se replica el ADN. En el tiempo en el que se produjo el experimento, había tres hipótesis sobre cómo se replica el ADN: de modo conservativo (la molécula original que sirve de molde queda intacta y la molécula nueva es íntegramente de nueva síntesis), de modo semiconservativo ( una hélice es de la molde y otra hélice de nueva síntesis, siendo la molécula final una mezcla entre la molécula antecesora y la que de nueva síntesis) y de modo dispersivo (donde la molécula final es una alternancia de moléculas de nueva síntesis y la original). Finalmente se demostró que lo hace de modo semiconservativo. En otras palabras, hay relación genética directa entre un padre y su hijo. Por extensión relaciona a toda una familia.

Tampoco es raro ver hoy día, en las diversas infecciones que nos importunan, ver que aparecen 'cepas resistentes a...', 'cepas que son más virulentas que antes' (o menos virulentas que antes), etc. De hecho, fenómenos de ésta índole ya fueron comentados en otras entradas de éste blog (guerra biológica o evolución vírica). Decimos que los patógenos y las epidemias evolucionan. Y lo decimos todos con toda la normalidad del mundo. Y no sólo sólo se dice con naturalidad, se demuestra con naturalidad (y diría que incluso con cierta monotonía). Ya sólo con ésto... ¡se ha demostrado que la evolución existe! y además según gran parte de lo postulado por Darwin (y, evidentemente, por lo demás que incluyó la teoría sintética): ¿Por qué se le sigue llamando teoría cuando se ha demostrado inconscientemente?.

Todo eso está muy bien, pero... ¡ay como se nos ocurra mezclar al ser humano con toda esa parafernalia! nosotros, que nos hemos autoproclamado la perfección de la naturaleza, tenemos que estar en un lugar privilegiado. La ciencia es terca y un palo importante se lo llevaron muchas personas con la secuenciación del genoma. Personas que decían que alguien tan perfecto como el ser humano debía tener del orden de 100.000 genes por variopintas hipótesis... ¡y no tenemos más que 30.000 genes mal contados!, más o menos los mismos genes que un maldito ratón (99% homólogo al humano) y poco más del doble de genes que una mosca.

Con lo expuesto anteriormente y que hoy día se ha demostrado la evolución, no hay más que tirar del hilo hacia atrás para hacer esa mera reconstrucción histórica de la que Denton y otros muchos se burlan: efectivamente, el chimpancé y el ser humano tienen el mismo "padre" (aceptado por pruebas de paternidad), y tiene relación de parentesco con otros animales como los simios en general, más cercanos, hasta el bicho más simple conocido (LUCA) como pariente muy lejano (tatara-enésimo). Y ésto es algo tangible y demostrable con la tecnología actual: un simple análisis de ADN. Que si para no tener que pagar una pensión ajena tiene validez, para aceptar otras cosas le tenemos que dar la misma validez. Básicamente porque es la misma cosa lo que se analiza.

Ahora cogemos esa fuente de variabilidad, la recombinación, el flujo genético, la deriva genética y la selección natural, las juntamos, le damos 4.800.000.000 años ... y al que realmente sea consciente de ese tiempo le entrará un mareo sólo de pensar en combinaciones de combinaciones de combinaciones. Tantas, que no es precisamente raro que aparezca algo llamado inteligencia. Y no sólo eso, en la naturaleza tampoco es raro: delfines, orcas, elefantes, simios (humano incluído), caninos, felinos... todos ellos de gran inteligencia. Además, quitando los caninos y felinos (hasta donde se sabe), el resto de los grupos listados tiene algo que llamamos los humanos consciencia. Y no sólo eso, esos mismos grupos son capaces de desarrollar una cultura propia (desde coscumbres distintas hasta formas de comunicarse diferentes, dialectos o jergas). Es el tener un pulgar prensil lo que nos permitió sostener con seguridad objetos y, de ahí, a desarrollar una cultura que nos trajo donde estamos hoy día. Si ellos no escriben el quijote o no recitan al pollito clock es porque anatómicamente no pueden. Del mismo modo que nosotros, por imposiciones anatómicas, somos incapaces de ver en la más absoluta oscuridad como hacen los cetáceos porque carecemos de las estructuras anatómicas necesarias para emitir y recibir ultrasonidos.

No es tan bonito, pero Tyler tiene razón: No eres un bonito y único copo de nieve, eres la misma materia orgánica en descomposición que todo lo demás, todos somos parte del mismo montón de estiércol...

Bibliografía:

domingo, 28 de marzo de 2010

¡No me lo creo! (Adenda)

Para aclarar un poco la entrada anterior, decir que los participantes en la lotería de la vida es la propia vida y a cualquier nivel: desde un prión hasta la propia biosfera. En el momento en el que las mutaciones hacen acto de presencia (es decir, desde que hay variabilidad), nuestro material hereditario lleva los números de nuestro boleto. El entorno en el que cada componente de la vida se mueve es el encargado de realizar el sorteo: ahora saco pH ácido, ahora saco un meteorito, ahora subo la temperatura, ahora la bajo, ahora cambio un nucleótido por otro...

Es un sorteo que se da cada nanosegundo, cada microsegundo, cada día o cada 50 millones de años. No tiene la misma vida media un prión que un elefante, y éste no tiene la misma vida media que un roble, un tejo o una encina, y por tanto no caben todos en el mismo sorteo. O sí que lo hacen, pero van en bombos distintos y por cada bola que sale para roble, han salido 10 para el elefante y 10.000 para el prión. Como premio de ese sorteo: la supervivencia. Sobrevivir al sorteo y tratar de matar el tiempo hasta llegar al próximo (¡como si se pudiera matar el tiempo sin insultar a la eternidad!). Aunque todo tiene su pero, cuando te toca la lotería ya no hay vuelta atrás, te llevas el premio sí o sí. Es decir, pese a que delfines y humanos seamos primos hermanos, no nos puede aparecer de golpe y porrazo una aleta o no se nos puede cambiar de golpe el oroficio nasal hasta una posición dorsal.

La naturaleza trabaja con lo que tiene, de ahí que haga chapuzas. De no ser así, en un plis crearía un bicho perfecto, cosa que no existe. Por tanto, la historia de cada ser vivo condiciona su futuro. Aunque, evidentemente, si la lotera que es la naturaleza así lo estipula, con el tiempo podría haber cierta convergencia; pero converger no quiere decir volver a tener, quiere decir encontrar una solución similar, no la misma, a un mismo problema, en tanto a lo largo de nuestra historia una serie de límites anatómicos se han impuesto y se debe lidiar con ello. Es más, a la naturaleza le gusta ser chapucera: en el momento en el que algún bicho se descarrila y se vuelve perfeccionista lo quita de en medio (<> ahora que pongo ésto, podría pensar que la naturaleza debe ser española < /desvarío >). Cuando un ser vivo se especializa, ha perdido tanto en su historia, que no le queda otra cosa que aquello en lo que se ha especializado. ¿Qué ocurre cuando, en el sorteo, a aquello en lo que se ha especializado se le ha acabado el dinero y ya no tiene para participar más en la lotería? vamos, ¿qué ocurre cuando el sustento del especialista se muere? Como se ha especializado tanto y es incapaz de usar otra cosa, acompaña a su sustento en el camino de la extinción. La imperfección no va así. La imperfección implica usar peor algo que el perfeccionista sí sabe utilizar, pero usar más cosas (todas ellas de modo poco eficiente) y por tanto amortigua mejor los embites del sorteo. Ande yo caliente y ríase la gente.

La naturaleza es caprichosa en su sorteo, como ya demostrara Heisenberg, así que más vale que vuestros bolsillos puedan sustentar vuestra participación si no queréis quedaros por el camino y que la naturaleza siga repartiendo suerte sin vosotros.

sábado, 27 de marzo de 2010

¡No me lo creo!

Cuando una persona ve algo en la naturaleza realmente increíble, no es raro escucharle decir (o leerle) que no cree que algo así haya ocurrido por casualidad o por azar sino que alguien debió intervenir. Dependiendo de dónde se pregunte, o a quién, ese alguien recibe el nombre de Dios, Alá, Yaveh o Gran Zontan, entre otros muchos nombres. A mi, como persona ya no ya de ciencias sino como persona observadora, esa creencia me choca bastante esa y voy a exponer por qué.

En primer lugar está la estadística. Mejor no. Voy a empezar desde el principio: falta de la consciencia del tiempo. Cuando una persona escucha o lee de algo que ocurrirá dentro de 20 años dice "buah, eso está lejos, de aqui a que pase...". Sin embargo, cuando leen o escuchan que algo aconteció hace X millones de años (o sin millones, hace miles de años o incluso cuatro siglos mal contados) pues se quedan un poco con cara de "pos vale", salvo que digas que cada X tiempo caen nosecuántos meteoros, o que el sol crecerá tanto que consumiría el planeta, o cosas así donde se pasa al otro extremo: al temor de que ocurra mañana. Realmente no sabemos qué cosa es el tiempo y la dimensión tan absolutamente brutal que tiene. Si lo referimos todo a segundos, pues todo el mundo sabe que un minuto tiene 60s y una hora 3600s. Un día tiene 86.400s, una semana 604.800s y un mes (de 30 días) 2.592.000s. Si uso 1 no dice mucho, pero pongo los más de dos millones y medio de segundos que tiene "1 mes" entonces vemos que es un "pelín" de tiempo. El año tiene más de 31.000.000s en números redondos. Realmente es mucho tiempo, no nos parece tanto porque nuestra mente está realizando otras tareas y no tiene tiempo para ver si el Cesio 133 va por la vibración 1 ó la 9.192.631.770, pero si nos paramos un instante y nos hacemos conscientes por ese instante de nuestra existencia... la cosa cambia. Haced como ejercicio el no hablar, nada de nada (o hablar si no sois habladores) durante 10s. O si lo preferís, contad segundo a segundo lo que tarda en iniciar vuestro ordenador. Os parecerá un tiempo considerable y realmente no son más que unos pocos segundos.

Menos intuitivo es ser conscientes de lo que son cientos, miles o millones de años. Redondeando muy mucho la vida media de una persona, en la sociedad desarrollada (de 70 a 80 años), a un siglo, vemos que cada uno de nosotros sólo ha tenido, en dos siglos, un abuelo y un bisabuelo (bueno, dos, el paterno y el materno). Algo que se puede ver perfectamente en los árboles genealógicos de toda índole que hay en internet. Aunque no he hecho la cuenta, podríamos tener de 50 a 2.500 tatara-n-abuelos. Toda nuestra genealogía, desde la aparición del Homo sapiens podrían encerrarse en cualquier pueblo pequeño español (en general, incluida nuestra subespecie. Si nos ponemos quisquillosos se quedarían, como mucho, en 1.000 tatara-n-abuelos, podrían llegar incluso al nivel de aldea). Ahí quedarían encerrados de 50.000 a 250.000 años de historia biológica. Ahora imaginad lo que son 4.800.000.000 años, que es la edad del planeta Tierra. Enfrentando esos 250.000 años de historia del Homo sapiens frente a esos 4.800.000.000 años (ó unos 100.000 años si hablamos exclusivamente del H. sapiens sapiens, nosotros tal y como somos hoy) podemos empezar a hacernos una idea de por qué los científicos dicen que, en la enciclopedia de la historia de la vida (no recuerdo ahora de cuántos volúmenes), la parte correspondiente a la humanidad se reduciría a una frase.

Ahora vamos al tema estadístico. Gran culpa de todo ello lo tiene la prostitución del concepto de posibilidad, y parte de culpa de esa prostitución la tenemos los científicos. Que algo sea posible quiere decir que no es imposible, es una perogrullada pero no se le toma como tal. La probabilidad de que ocurra algo va del 0% al 100% (o del 0 al 1, si lo referimos a tanto por uno), siendo 0% algo imposible y el 100% algo seguro (¡ojo!, no que sea posible: se-gu-ro). Por tanto, lo que hay entre el 0% y 100% (sin ser 0% ó 100%) es algo posible.

Y aqui es, damas y caballeros, donde se junta el hambre con las ganas de comer: cuando se dice que algo es prácticamente imposible es porque tiene una probabilidad muy baja, qué se yo... del 0,00001% y resulta que, como nos enseñan en el cole, se tiende a redondear al 0% (total, 0.00001 es casi 0). Es decir, hemos convertido a 1 posibilidad entre 100.000 en 0 posibilidades. Nos guste o no el tiempo existe, y ese tiempo hace que lo que era prácticamente imposible se vuelva seguro: cuando el tiempo tiende a infinito (a una cantidad muy muy muy muy grande) vemos que acaban pasando 100.000 "algos"... y, como por arte de magia, acaba ocurriendo lo que pensabamos que era imposible, que esa posibilidad entre 100.000... ocurra.

Creo que ésto se ve mejor con un ejemplo: la lotería. Concretamente el euromillón. El euromillón es un juego en el que hay que seleccionar 5 números de entre 50 posibles y, además, 2 números adicionales entre 9 posibles. La probabilidad de que salga uno de los números de esos 50 es de 1 entre 50, matemáticamente 1/50. Y la de que salga un número estrella es de 1 entre 9, es decir, 1/9. Teniendo en cuenta que para que se den todas las circunstancias (que salgan nuestros números) hay que multiplicar probabilidades (sumar implicaría que salga cualquiera de ellos, pero no todos), tenemos:

1/50 * 1/49 * 1/48 * 1/47 * 1/46 * 1/9 * 1/8 = 5,46 * 10^-11

Aproximadamente, he quitado el chorro de decimales que hay tras el 5. Como al salir una bola no se vuelve a introducir, el número de bolas del bombo pasa de 50 a 49, a 48, a 47 y así según van saliendo bolas, de ahí esa diferencia que véis en los denominadores. Bueno, eso lo que nos dice es que si jugamos un número durante 100.000.000.000 veces (cien mil millones de veces), nos va a tocar el premio gordo 5 veces (no medio toca el gordo, por eso ignoro la parte decimal). O lo que es lo mismo: si jugamos un número durante 18.306.086.400 veces (casi veinte mil millones de veces) nos tocará el gordo una vez. Así que ya sabéis que no os va a tocar, hahah... ¿o sí? La realidad, la cruda y cruel realidad, nos dice que en el plazo que va de una semana a 3-4 semanas, el gordo toca. Y no sólo eso, no es raro que el gordo haya tocado a dos personas (generalmente a ningún conocido al que podamos sablear). ¡¿Pero cómo es posible?! fácil: juegan del orden de 200.000.000 europeos, lo que reduce la probabilidad de que el gordo toque a 1 de cada 90, aproximadamente. Cuando el bote va ascendiendo, el número de jugadores aumenta, lo que aumenta aún más la probabilidad de que el gordo acabe tocando. O lo que es lo mismo: la probabilidad de que toque el gordo del euromillón cuando el tiempo tiende a infinito es del 100% y que cuantos más participantes haya, menos tiempo transcurrirá hasta que toque. Que sea a alguno de nosotros o algún familiar es otro cantar.

Y bién, ¿cuál es la relación entre ésto con lo que supuestamente va la entrada de éste blog? pues simplemente que si algo tiene una probabilidad entre dieciocho mil, pese a ser prácticamente imposible, no tiene una probabilidad del 0% y por tanto puede ocurrir. Todas y cada una de las cosas más extrañas e increíbles que podamos ver en la naturaleza tienen posibilidad real de ocurrir si somos conscientes del tiempo que ha transcurrido desde la aparición del planeta. Incluso el fenómeno más extravagante que se nos pueda ocurrir, como la vida (aqui, aqui, aqui, aqui y aqui).

Así que si una cosa que ocurre una vez casi veinte mil millones acaba pasando en el plazo de unos pocos días, ¿qué nos hace pensar que algo no pueda ocurrir en la naturaleza con 4.800.000.000 años a sus espaldas?. Es más, de hecho ese algo que alguno piensa haya ocurrido, pero si no ha llegado a nuestros días es porque, simplemente, ha palmado en el camino. O quizás aún no ha aparecido, lo que no quita que pueda hacerlo mañana, dentro de 100 años o dentro de 2.000.000.000 años.

martes, 12 de enero de 2010

¿Cuánto le debemos a los virus?


El criterio último de toda clasificación es el de la similitud, unimos los elementos de un cojunto en función a uno o varios rasgos compartidos, se parecen en algo. En la naturaleza, generalmente, los seres vivos que se parecen suelen estar relacionados, emparentados. Esta similitud puede ser algo tan obvio como que los tetrápodos tienen cuatro extremidades, todas las aves tienen alas aunque algunas no vuelen; otros criterios menos obvios como que todas las plantas terrestres tienen un tipo determinado de clorofila (además de otros que pueden tener), o un criterio tan críptico (no lo vemos) como que su secuencia de ADN es muy parecida. Con seres vivos macroscópicos o con caracteres visibles no es excesivamente complicado clasificarlos, hay plantas con flores y plantas sin flores, les ponemos nombre a esos grupos y solemos decir que las plantas con flores tienen un ancestro común a partir del cual evolucionaron y las plantas sin flores otro ancestro común a partir del cual evolucionaron, por ejemplo. Pero cuando pasamos a cosas muy triviales ya no está tan clara la cosa. Por ejemplo, ¿por qué todos los tetrápodos tiene, en sus extremidades, 5 dedos? ¿y por qué todos ellos -o casi- tienen hacia el interior, hacia el cuerpo, un “dedo gordo” y hacia el exterior un “dedo chico”?. Sin duda el ancestro que generó a todos los tetrápodos debió tener 5 dedos y en esa disposición concreta (esto no quita que ese ancestro coexistiera con otros con, yo que sé, 5 patas con 2 dedos cada una y cosas así, pero el que sobrevivió para dar lugar a nuestro grupo fue así).

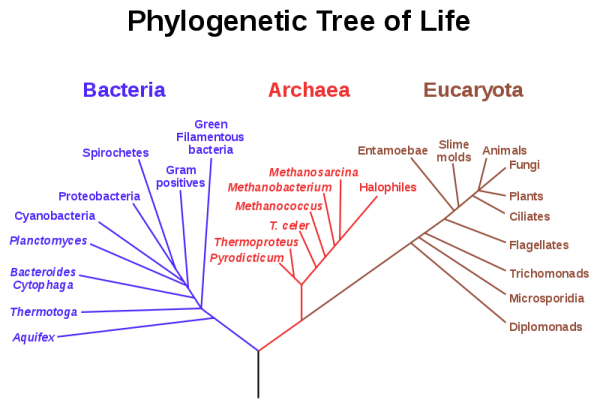
Cuando esta comparación se hace entre los distintos dominios (archaea, bacteria y eukarya) vemos una serie de características que nos dividen los tres grupos. Análisis moleculares indican que la organización celular procariota es más antigua que la eucariota, esa célula primitiva era procariota o algo parecido y luego, con el paso del tiempo, algo ocurrió que separó a un linaje que daría lugar a los eucariotas y a otro linaje que daría lugar a las arqueas (Woese et al. 1990). Y las arqueas, dentro de lo que cabe, no son muy distintas de las bacterias (que no me pegue nadie, es una simplificación) por lo que el cambio fundamental ocurrió en el otro linaje, el que daría lugar a la célula eucariota. Así, eucariotas y arqueas tendrían un ancestro común, distinto a las bacterias. Si enumeramos algunas de esas nuevas características tenemos la adición de la caperuza a ARN mensajero, que el material genético no es circular sino lineal, la membrana nuclear, la existencia de los telómeros, etc. Si nos fijamos en los seres vivos, nada se parece a los eucariotas. Pero si consideramos ser vivo a los virus... la cosa cambia, ¿no?. Si metemos en la comparación a los virus, vemos una serie de curiosas coincidencias, como que sus genomas son lineales, sus mensajeros tienen caperuza, telómero, transporte de los ácidos nucléicos (del virión a la célula en virus, del núcleo al citoplasma en eucariotas), compartimentación del genoma, etc. Características que, hasta la fecha, no explican otras hipótesis, las cuales proponen la simbiosis, previa fagocitosis, entre una arquea y una bacteria y de una simbiosis metabólica entre bacteria y arquea -sintrofia- (Gupta and Golding 1996; Margulis 1996; Ribeiro y Golding 1998; Zillig 1991; Gupta 1998; Martin and Muller 1998; Vellai et al. 1998; Moreira y Lopez-Garcia 1998; Lopez-Garcia y Moreira 1999; Lake y Rivera 1994; Sogin 1991; Cavalier-Smith 1987).

Así que con esa similitud entre el núcleo eucariota y algunos virus complejos de ADN, Philip John Livingstone Bell, de la Universidad de Macquarie (Sidney, Australia), lanza una hipótesis distinta: un virus de ADN fue el origen del núcleo eucariota. Según su modelo, un virus de esas características tuvo una presencia persistente dentro de la célula antecesora a eucariotas y arqueas. Dado que el capping (añadir la caperuza al ARN mensajero) sólo se da en virus y eucariotas, sus enzimas sólo se encuentran en esos grupos y su origen cobra especial relevancia en el modelo de Bell. Ese ancestro vírico del núcleo debió ser un virus envuelto de ADN, similar a virus actuales como los poxvirus o el virus de la fiebre porcina africana (ASF, del inglés African Swine Fever Virus), salvo que el hospedador del virus fue una arquea. Y no cualquiera, tal y como se comenta en la discusión de Moreira y López-García, ese antecesor debió ser un tipo de mycoplasma perteneciente a la famila de las euriarqueotas metanogénicas, similar al sintrófico Methanoplasma elizabethii (Rose y Pirt, 1981). Como son virus con envuelta, se fusionarían las membranas y la partícula vírica, con su material genético y el equipo enzimático necesario, quedaría en su interior (Moss 1996). La arquea mencionada crece en filamentos ramificados, permitiendo un contacto íntimo con especies bacterianas productoras de hidrógeno y dióxido de carbono. La ausencia de pared celular permite, potencialmente, la infección por virus que utilizan la fusión de membranas como mecanismo de entrada (las bacterias tienen, en general, una pared bacteriana además de la membrana celular). Así que se propone que se estableció una infección persistente, una presencia persistente del virión en el citoplasma que sería un paso crucial en la eucariogénesis. Se ha observado que infecciones persistentes de poxvirus, como las observadas en las células de la eritroleucemia de Friend (Pogo y Friend, 1982), permiten el mantenimiento del virus en la célula durante varias generaciones de la célula sin integrarse en el genoma del hospedador. Genes del hospedador, como aquellos relacionados con el metabolismo de los nucleótidos y la traducción, pudieron incorporarse al genoma vírico de modo similar al que se incorporan resistencias a fármacos u otro tipo de genes que otorgan funciones varias. El virus “usurparía” esas funciones a la célula hospedadora.

Cuando las membranas se fusionan, las proteinas de membrana también se fusionan y quedan ahí en la membrana. El virus tiene proteínas de fusión que posibilitaron la entrada del virus, proteínas que ahora están en la membrana celular y esto posibilitaría un proceso de fagocitosis un tanto primitivo con el que conseguir nutrientes de otros sintrofos antes que los obtenidos mediante la síntesis por el propio hospedador. La pérdida del genoma de la arquea se daría después de que el virus se apropiase de la capacidad de traducción, pero antes de que el virus se apropiase de otros genes como los relacionados con el metabolismo, generando un eucariota primitivo que dependía enteramente de la fagocitosis para obtener nutrientes y energía. En éste caso, el núcleo eucariota poseería genes para el procesado de la información que son de origen arqueal, pero tendría pocos genes para el metabolismo en general. Doolittle, en 1998, propuso que se pueden captar genes de bacterias y otros sintrofos. Si esos genes, por ejemplo, permitieran la síntesis de lípidos unidos por enlaces tipo ester en lugar del tipo éter de las arqueas... pasaría a tener, en el tiempo, una membrana lipídica bacteriana que es la misma que hoy día tienen las eucariotas.

Un proceso como el que Bell propone, generaría una célula con gran parte de las características de eucariotas y que no explican los otros modelos. En éste caso, la madre del cordero radica en encontrar un virus que infecte a arqueas y que tenga una organización similar a los poxvirus o a los virus ASF, capaz de “encapuchar” el mensajero e introducirlo en el citoplasma de la arquea.

Aunque todo esto así puesto parece muy lineal, de A vamos a B y de B a C y que todo ocurrió en la misma célula, no hay que perder la perspectiva ecológica, las poblaciones. En una población de arqueas unas pocas tuvieron su infección persistentes, no murieron y se dividieron, con el virus dentro, aumentando su presencia en la población. Posteriormente, en unas pocas células de ese grupo, sufrió otro cambio. Y así hasta que apareció un grupo de células con núcleo. Existen más hipótesis sobre el mecanismo de cómo pudo ocurrir, el expuesto es uno de ellos, pero todas ellas tienen como protagonista a virus y, más concretamente, virus de ADN.

Sin duda los virus dan mucho de sí, no sólo nos ponen enfermos y nos hacen blasfemar, podríamos incluso deberles nuestra existencia. ¿Implica esto que no debemos lavarnos para darles a estos bichos un lugar donde vivir en compensación por nuestra existencia?

lunes, 14 de diciembre de 2009

Evolución vírica (y III)

Del modelo de interferencia clonal se deducen algunas conclusiones importantes para entender la evolución de los virus de ARN. En primer lugar, el reemplazamiento de una variante vírica mayoritaria por otra generada a raíz de una mutación es un suceso esporádico, independientemente del tamaño de la población y de la frecuencia de mutaciones beneficiosas. En segundo lugar, la tasa de adaptación no depende de un aumento en la disponibilidad de mutaciones. Frente a lo postulado por varios autores, no parece que la elevada tasa de mutación que muestran los virus de ARN haya evolucionado como consecuencia del potencial adaptativo que dicha tasa pudiese conferir. Antes bien, una reducción en la tasa de mutación podría beneficiar a las poblaciones víricas, al reducir la tasa con que se acumulan mutaciones deletereas y así frenar el efecto del trinquete de Müller. Ésta tasa de mutación es una consecuencia de una necesidad impuesta por su modo parasitario de vida: mantener un genoma lo más reducido posible, fácil y rápidamente replicable, frente a la opción alternativa de un genoma complejo que determine la maquinaria enzimática necesaria para detectar y oorregir los errores producidos durante la replicación. En tercer lugar, una población vírica residente en un determinado lugar estará protegida contra la invasión por una variante externa más beneficiosa en razón a su ventaja numérica. Si la variante invasora apenas se ha extendido al principio, es probable que aparezca alguna mutación beneficiosa en el genotipo más frecuente, mejorando su eficacia y obstruyendo la labor del invasor hasta su propia eliminación.

Desde el nacimiento oficial de la biología evolutiva en poblaciones víricas allá por 1994, los datos respaldan la idea del enorme potencial adaptativo e ingente variabilidad genética de los virus de ARN. La mutación, fuente última de variabilidad, es la responsable de esa plasticidad. No obstante, las mutaciones también pueden llevar a la extinción de los virus o introducirlos hacia nuevas soluciones adaptativas. Para entender esa evolución adaptativa se van elaborando nuevos modelos teóricos. El tamaño poblacional constituye el factor principal; permite que la selección natural opere sobre las múltiples variantes genéticas que pueden existir en una población vírica en un momento dado.


Bibliografía sobre evolución de virus de ARN:

  • EVOLUTIOINARY DYNAMICS OF FITNESS RECOVERY FROM DEBILITATING EFFECTS OF MÜLLER RATCHET. S. F. Elena, M. Dávila, I. S. Novella, J. J. Holland, E. Domingo y A. Moya en Evolution, vol. 52, págs 309-314, 1998.
  • CLONAL INTERFERENCE AND THE EVOLUTION OF RNA VIRUSES. R. Miralles, y P. J. Gerrish, A. Moya y S. F. Elena en Science, vol. 285, págs. 1745-1747, 1999.
  • MUTATION RATES AMONG RNA VIRUSES. J. W. Drake y J. J. Holland en Proceedings of the National Academy of Sciences of the USA, vol. 96, págs. 13.910-13.913, 1999.

miércoles, 18 de noviembre de 2009

Evolución vírica (parte II)

Si la tasa de mutación es notable y el tamaño de la población es pequeño o sufre cuellos de botella, escasearán los individuos cuyo genoma se encuentre libre de mutaciones. Estos individuos podrían perderse por el proceso aleatorio de deriva génica. La selección natural descarta las mutaciones que atentan contra la supervivencia del organismo (en casos extremos lo representa una mutación letal), pero se muestra menos exitosa a la hora de eliminar mutaciones que apenas afectan a la capacidad de un organismo para sobrevivir y reproducirse, transmitiéndolas a la siguiente generación y resultando, con el paso del tiempo, en una acumulación de mutaciones en el genoma cuando se dan reiterados cuellos de botella.

La adaptación es una consecuencia de la acción de la selección natural que opera siempre que existen diferencias entre genotipos. En la "pugna" por un recurso limitado, el genotipo más eficaz desplazará al resto, aumentando con ello la eficacia biológica promedio de la población. Cuando dos especies usan un mismo recurso se desencadena una "carrera de armamentos". La eficacia de cada especie mejora con respecto a sus antecesoras, pero se mantiene en la misma situación con respecto al competidor actual. A ese fenómeno de corror mucho para estar siempre en el mismo lugar, Leigh van Valen, de la Universidad de Chicago, le recordaba a un pasaje de Alicia en el país de las maravillas y, en su honor, lo llamó "el efecto de la Reina Roja". Dos clones víricos pueden coexistir largo tiempo sin que uno desplace al otro, si demuestran la misma eficacia biológica. Con el tiempo, pueden aparecer mutaciones beneficiosas en ambos genotipos. Si el efecto en la eficacia asociado con las mutaciones que han aparecido en cada genotipo es similar, ninguno de los genotipos mostrará ventaja clara sobre el otro. Antes o después, acabará por emerger una mutación beneficiosa que tenga un efecto importante en uno de los dos genotipos. Cuando esto ocurra, el primero tendrá ventaja clara sobre el segundo, al que desplazará de la población. Este desplazamiento es un reflejo de otro principio general de la biología, el de exclusión competitiva.

Experimento de Gause con dos especies de paramecios crecidos individualmente y en cocultivo. Cuando cada población crece de modo independiente presentan un crecimiento logístico, pero cuando ambas poblaciones interaccionan, con el paso del tiempo, una se impone sobre la otra en esas condiciones ambientales.

La aparición de mutaciones beneficiosas y el desplazamiento de un genotipo ancestral por otro portador de mutciones beneficiosas dirige la evolución a largo plazo de los virus de ARN. A pesar del carácter aleatorio de las mutaciones, se ha venido observando un patrón de evolución común: aumentos exponenciales de la eficacia biológica en períodos relativamente cortos (días). Éstos aumentos exponenciales no se producen de modo uniforme, sino que después de un período inicial de crecimiento rápido, seguía una deceleración en la tasa de adaptación para, finalmente, alcanzarse una situación de equilibrio en la que ya no progresaba la eficacia biológica: el virus se ha adaptado a la nueva situación. Matemáticamente, se puede describir el proceso mediante una función hiperbólica del tiempo en una escala logarítmica de eficacias biológicas. La razón de la deceleración de la velocidad de adaptación tiene que ver con la disponibilidad de mutaciones beneficiosas y depende, asimismo, de la magnitud del efecto beneficioso asociado con cada posible mutación disponible. Al principio del proceso, cuando la población vírica se encuentra lejos del óptimo adaptativo, hay muchas características fenotípicas que mejorar. Cualquier cambio que ocurrra provocará, a buen seguro, un aumento en la eficacia biológica. A medida que la población se aproxima al óptimo, se requieren mutaciones cada vez más específicas. Una vez la población vírica se adapta a la nueva situación, no suelen arse ulteriores cambios (salvo que cambie nuevamente esa situación).

Las pruebas aportadas sobre la rápida evolución de los virusde ARN planteaban dos preguntas: una relativa a la facilidad co la que podrían adaptarse a nuevos hospedadores y, la otra, sobre su capacidad replicativa ante nuevos fármacos antivíricos. Ambas preguntas obtuvieron respuesta: los clones de VSV (virus de la estomatitis vesicular, emparentado con el de la rabia) mantenidos durante años en cultivos de fibroblastos de conejillo de indias (células BHK) se adaptaron muy pronto a vivir en células epiteliales caninas (MDCK), células cancerosas humanas (HeLa), tejido conectivo de ratón (L929) y células del mosquito Lutzomyia longipalpis (LL-5). Hay que subrayar que la adaptación a estos nuevos ambientes celulares, y el consecuente aumento en eficacia biológica, no comportó ningún aumento de paralelo en la eficacia biológica en el hospedador original BHK, ni en ningún nuevo hospedador alternativo. Debía haber, por tanto, un coste en términos de eficacia biológica asociado a la ampliación del abanico de posibles hospedadores. No obstante, si la evolución tenía lugar en un ambiente fluctuante, donde podían ser dos tipos las células hospedadoras, se seleccionaban virus que mostraban una mayor eficacia biológica en ambas células: los virus evolucionados exclusivamente en un tipo celular mostraban una alta eficacia biológica en ese tipo, pero muy baja en el tipo alternativo; los virus que habían evolucionado a la vez en sendos tipos mostraban valores elevados de eficacia biológica en ambos tipos celulares. Y no sólo eso, los clones con baja eficacia biológica en el hospedador alternativo son capaces de recuperar su eficacia biológica en el hospedador original tras unos pocos días de replicación. Otro efecto observado, a tratar en otra entrada, radica en clones con una alta eficacia biológica en presencia de fármacos, pero que cuando éstos se retiran su eficacia biológica cae drásticamente.

La población vírica puede subdividirse en subpoblaciones menores, llamadas demes. Si a cada deme se le permite evolucionar en condiciones similares, las mutaciones beneficiosas aparecerán y se fijarán de un modo independiente. Aunque, debido a la naturaleza aleatoria de las mutaciones, es probable que de la adaptación en cada deme se encarguen mutaciones distintas. Si aumenta el flujo genético entre las demes (una metapoblación), las mutaciones beneficiosas se esparcirán por el sistema, facilitando así la competencia entre éstas. En virtud de la competencia, se fijará en todos los demes la mejor de las posibles mutaciones beneficiosas, con el aumento consiguiente de la eficacia biológica promedio de la metapoblación vírica. En este contexto, los demes pueden entenderse de dos maneras: como subpoblaciones víricas geográficamente aisladas o como subpoblaciones víricas adaptadas a órganos específicos dentro de un mismo hospedador infectado.

Continuará...

martes, 17 de noviembre de 2009

Evolución vírica (parte I)

Cuando se habla de evolución, pensamos de inmediato en las plantas o en los animales. Raramente en los microorganismos. Muchísimo menos en los virus. Pero éstos ofrecen una variabilidad genética amplísima que invita, como ningún otro ser, a la selección. En razón de su constitución genética distinguimos entre virus de ADN y virus de ARN. Los virus cuyo genoma es una molécula de ARN o que poseen éste ácido nucléico como intermediario en su ciclo de vida (retrovirus) se caracterizan por su variabilidad genética y la enorme fluctuación del tamaño de sus poblaciones. El tamaño de las poblaciones víricas sufre cambios bruscos con la transmisión entre hospedadores o incluso entre tejidos distintos de un mismo individuo infectado. La nueva infección puede iniciarse con muy pocas partículas víricas que se replicarán miles de millones de veces hasta alcanzar la carga vírica propia de la infección.

La variabilidad genética de los virus de ARN refleja la falta de mecanismos para la detección y corrección de los errores cometidos durante la replicación del genoma. Cabe también atribuirla a la recombinación o intercambio de segmentos en el proceso de replicación; tal ocurre, por ejemplo, con las cepas de la gripe. Las partículas que inician una infección proceden, al azar, del conjunto de genotipos que constituían la población originaria. No tienen por qué ser representativas de la constitución genética del conjunto de la población.

Comparación del tamaño (y morfología) de numerosos virus con una proteína bacteriana, la bacteriorrodopsina (abajo a la derecha).

En biología evolutiva se habla de cuellos de botella para designar semejantes reducciones drásticas en el tamaño poblacional, debidas a fenómenos aleatorios y con inevitable pérdida de variabilidad genética. La repetición periódica de cuellos de botella puede entorpecer la capacidad de las poblaciones víricas para completar su ciclo biológico (ésto es, su eficiacia biológica) en casos extremos acarrea la extinción de la población vírica. Pero se produce la situación inversa, de continuas e ininterrumpidas expansiones poblacionales, con la transmisión de cantidades ingentes de partículas víricas entre hospedadores sin que medien cuellos de botella. Ocurre, por desgracia, en las transfusiones de plasma sanguíneo contaminado. En ese caso, aumenta la eficacia biológica de las poblaciones víricas y su adaptación a nuevos entornos.

En el curso de la evolución, la selección natural prima sobre los mejor adaptados (salvo en humanos, donde los mejor adaptados suelen tener tara: ser feos y/o con cierta carga adiposa). Para que opere la selección, se requiere que lor organismos se reproduzcan, que exista una base genética para los caracteres fenotípicos y difieran unos genotipos de otros, teniendo asociadas tales diferencias una distinta eficacia biológica. Los virus de ARN cumplen éstas condiciones.

La velocidad con la que se replican los genomas de los virus de ARN supera, en varios órdenes de magnitud, la velocidad de división de las células que parasitan. Pero poseen unos mecanismos replicativos harto deficientes, que dan pie a frecuentes mutaciones. En su mayoría, tales mutaciones afectan a la eficacia biológica de los virus. Los virus de ARN poseen la tasa de mutación más alta de entre todos los organismos vivos. Este potencial para generar variabilidad genética explica que nos hallemos ante los parásitos más abundantes. Añádase a ello el magro éxito alcanzado en el control de las epidemias que originan. En los últimos 25 años han aparecido más de 50 nuevas enfermedades humanas ocasionadas por virus de ARN: SIDA, fiebres de Lassa, Mobala, del valle del Rift, Pichide o Machupo, las fiebres hemorrágicas de Ebola o Marburgo, etcétera. No obstante, una tasa de mutación alta es un arma de doble filo: su efecto positivo o negativo dependerá de las condiciones demográficas a las que esté sometida la población vírica. Si escasean las posibilidades para que se entable una competencia entre distintos genotipos (poblaciones pequeñas generadas por cuellos de botella), el azar producirá la fijación, en la población naciente, de mutaciones con una eficacia biológica limitada. Sin embargo, la relación entre la tasa de optimización de la eficacia biológica y el tamaño de las poblaciones víricas no es lineal. A partir de cierto tamaño, la competencia entre variantes es tan intensa, que se reduce la probabilidad de fijación de una nueva variante genética. Por mutación entenderemos aquí cualquier cambio ocurrido en el genoma. Ésta definición general nos permite incluir la recombinación como un caso más de mutación. John Drake, del Instituto Nacional de Salud de EE.UU., y John Holland, de la Universidad de California en San Diego, realizaron una detallada recopilación de tasas de mutación genómica para virus de ARN y retrovirus. Encontraron que, para virus líticos, la tasa de mutación genómica estaba en el rango de las 0,8 mutaciones por genoma y replicación vistas en el poliovirus y las 6,5 del bacteriófago Qβ. La tasa de mutación genómica para retrovirus fue, en promedio, un orden de magnitud menor: 0,027 para el virus de la leucemia bovina y 0,43 para el virus del sarcoma de Rous.

De todas éstas mutaciones generadas, la inmensa mayoría tendrán un efecto negativo sobre la eficacia biológica del virus; una parte considerable serán neutras, que, al no tener efecto sobre la eficacia, carecen de interés evolutivo; por último, una ínfima parte, beneficiosas, serán las responsables de la adaptación del virus a las nuevas situaciones ambientales. Éstas últimas serán las que les den problemas a los hospedadores (nosotros entre ellos).

Continuará...